|
|
||
|
马陆对土壤温室气体排放影响机制的研究进展与展望
生物多样性
2026, 34 (7):
26016-.
DOI: 10.17520/biods.2026016
大气CO2、CH4、N2O等温室气体排放剧增所导致的全球变暖已成为国际社会和科学界共同关注的焦点。土壤动物如何介导碳氮循环过程进而驱动温室气体排放, 是全球气候变化研究的前沿科学问题。马陆作为全球物种多样性最丰富(> 12,000种)的关键节肢动物类群, 能够扮演消费者、分解者、捕食者及土壤工程师等多重角色, 可直接或间接调控土壤碳氮循环过程及相关温室气体(CO2、CH4、N2O)的排放。目前, 关于土壤动物对温室气体排放影响机制的研究主要集中于蚯蚓、白蚁等类群, 而有关马陆调控土壤温室气体排放的研究则十分缺乏, 大多为近20年来针对5目25科34属共几十个模式物种所开展的微观或控制实验。本文系统梳理了国内外关于马陆对土壤碳氮循环及CO2、CH4、N2O等排放影响的研究成果, 初步总结了其影响过程及机制: (1)马陆取食分解凋落物时, 肠道过程刺激自身呼吸、肠道酶活性及功能微生物活动, 直接促进CO2、CH4、N2O的排放; 同时通过凋落物破碎和粪球效应介导微生物及土壤动物活动, 间接影响温室气体排放。(2)马陆通过分泌、消化和排泄等作用调控土壤碳氮矿化及微生物呼吸过程, 从而影响土壤温室气体的产生。(3)马陆通过介导土壤功能微生物、功能酶、需氧-厌氧环境等变化影响土壤硝化、反硝化、氧化和还原过程, 从而调控CO2、CH4和N2O的排放。(4)马陆通过与根系、土壤、微生物及其他节肢动物的相互作用介导植物和土壤环境变化, 进而影响碳氮矿化、硝化、反硝化、甲烷生成与氧化等关键过程, 间接驱动土壤温室气体排放。未来的研究应重视“基于野外原位控制及微宇宙实验”的机理解析, 探索不同食性马陆对土壤碳氮关键过程、碳氮固定及温室气体排放的影响机制, 科学评估马陆活动对CO2、CH4、N2O排放的促进或抑制效应。 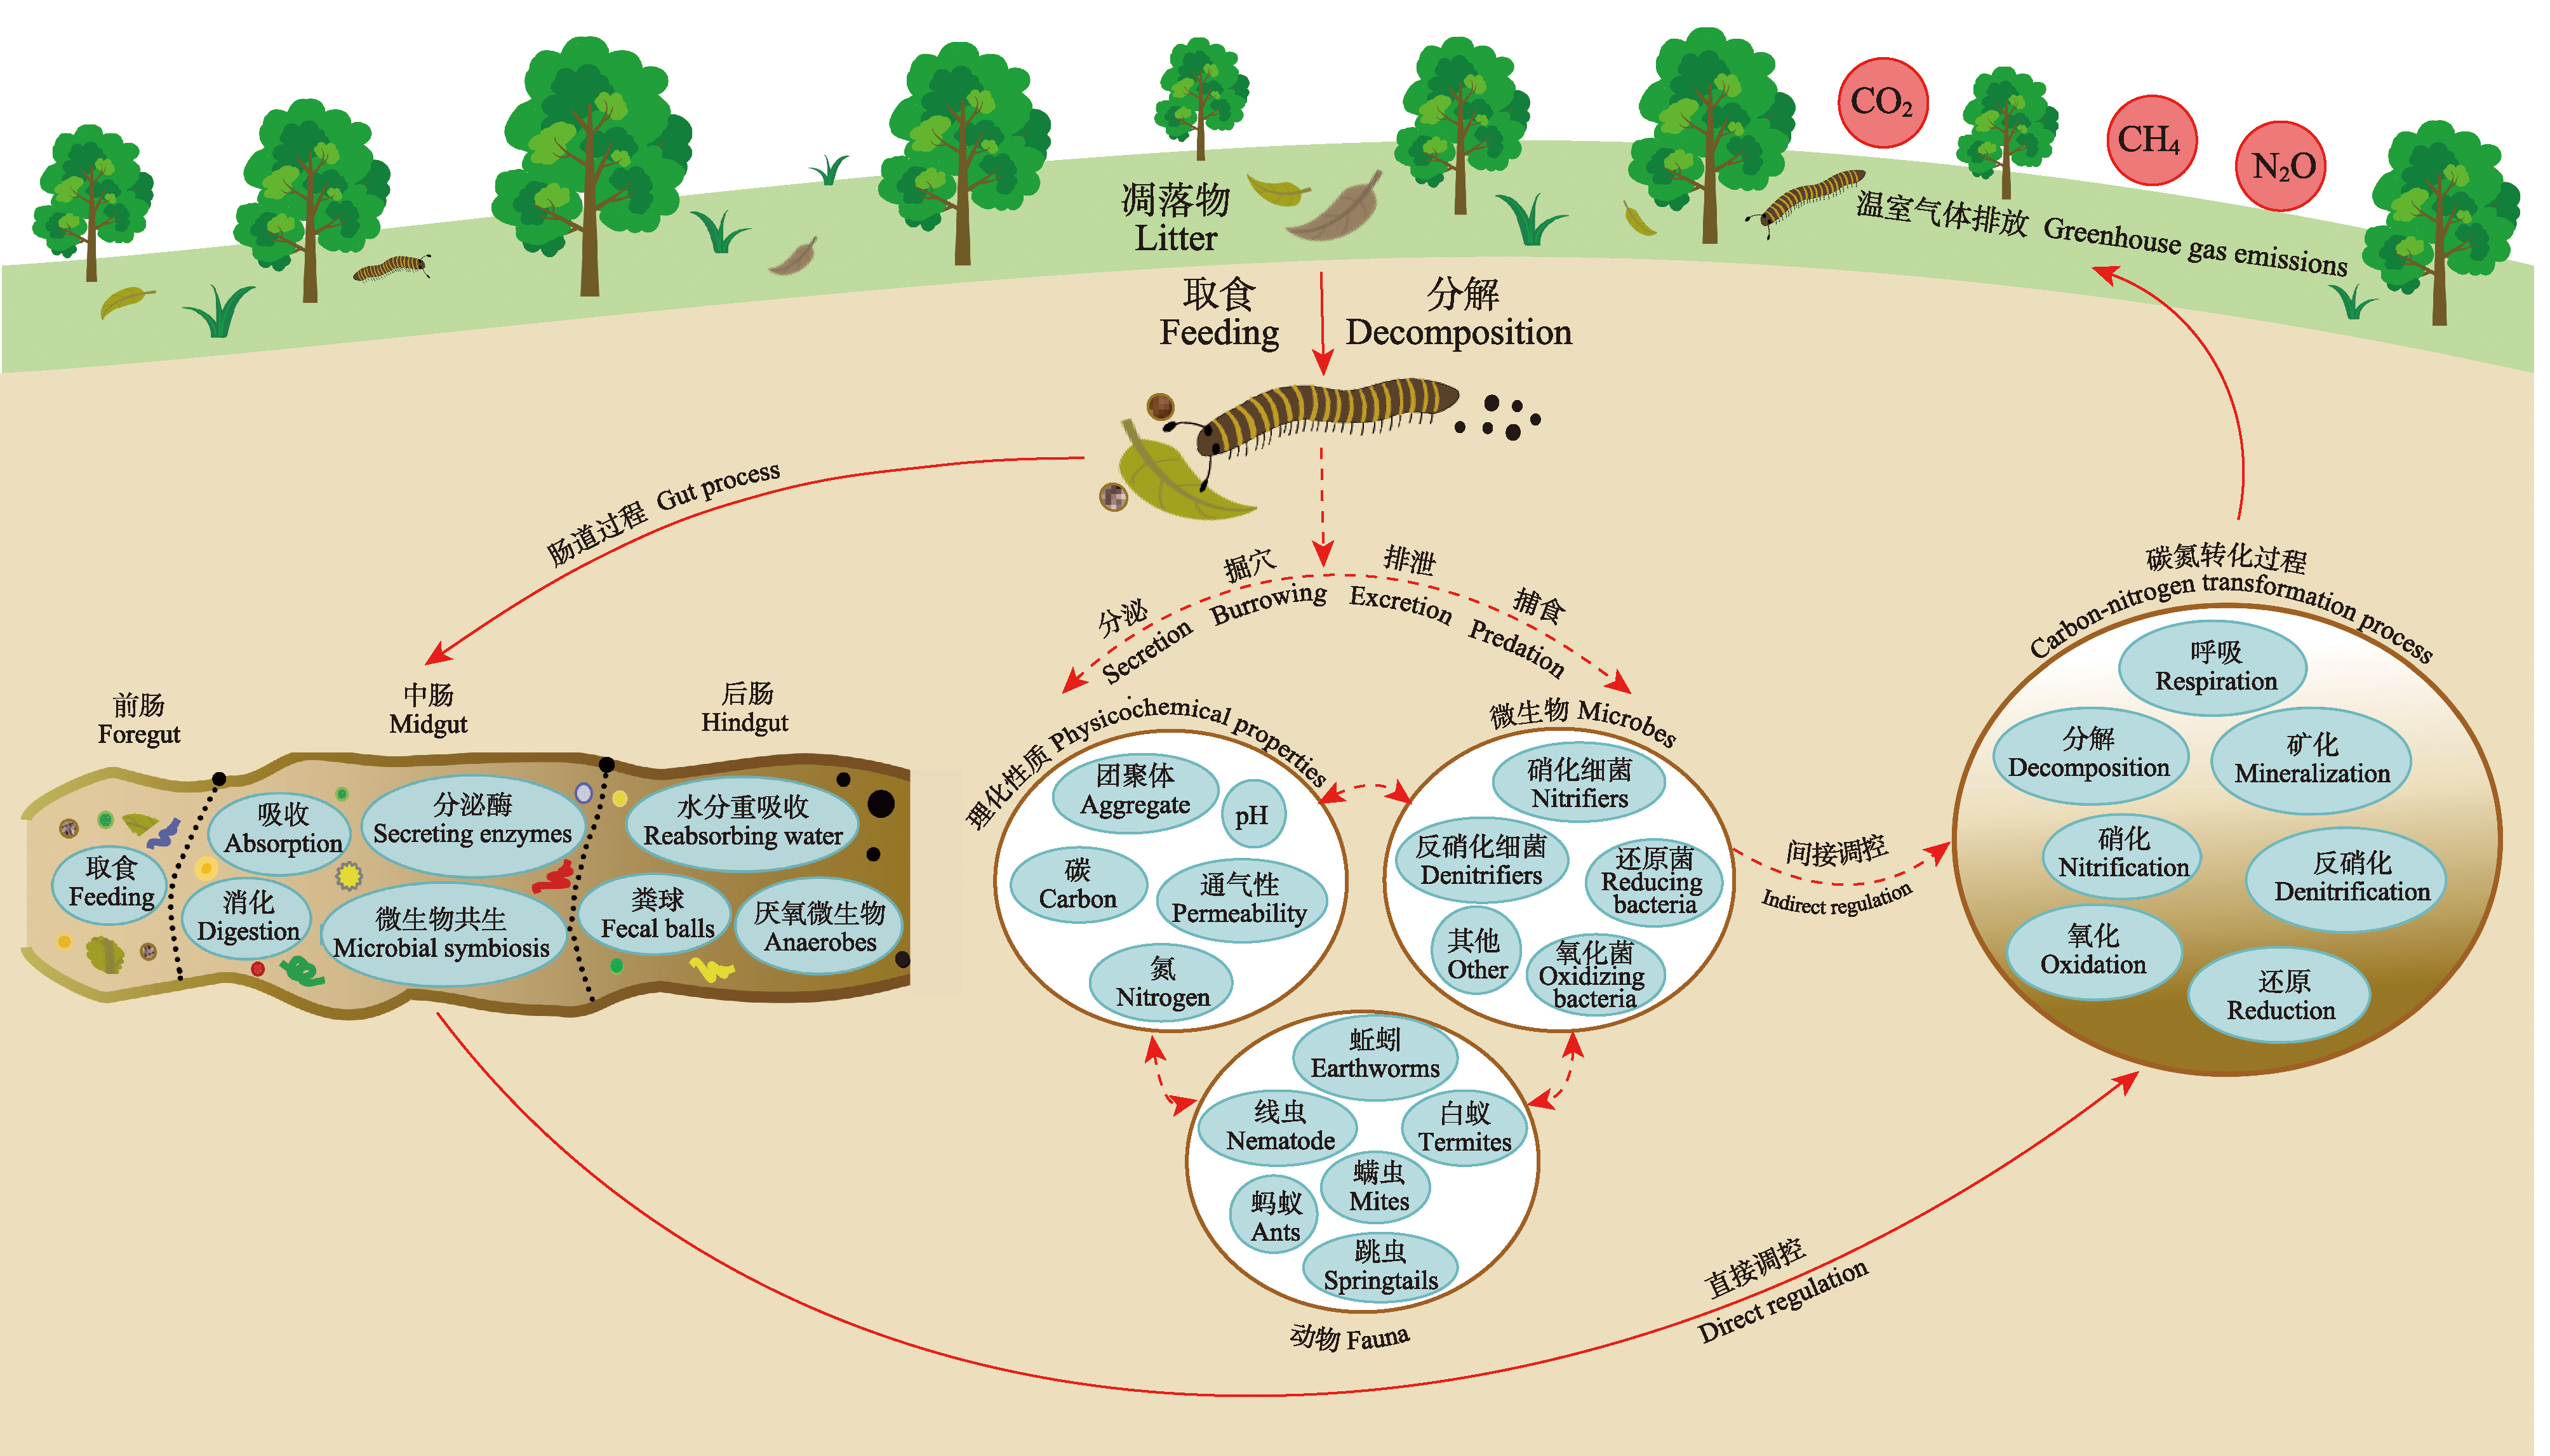 View image in article
图1
马陆对温室气体排放影响的过程及机制。该图基于现有研究案例归纳总结, 实线和虚线分别表示直接和间接调控。
正文中引用本图/表的段落
马陆(millipede)隶属节肢动物门多足类倍足纲, 广泛分布于森林、草地、农田、湿地等陆地生态系统(Iniesta et al., 2023; Nzoko-Fiemapong et al., 2023), 是仅次于昆虫纲和蛛形纲的区系组成和物种多样性最丰富的节肢动物类群(Shelley, 2007; 王梦茹等, 2018; McMonigle, 2023)。目前已知的马陆物种数超过12,000种, 分属16目147科1,868属(Sierwald & Bond, 2007; Brewer et al., 2012; Minelli, 2015; Kime & Enghoff, 2017)。马陆食性十分多样, 包括食腐性(Roy & Joy, 2009; Šustr et al., 2020; Horváthová et al., 2021; Nweze et al., 2024b)、食微性(Mesibov, 2005; Wesener et al., 2010; Moritz et al., 2021)、杂食性(Brandt, 1833; Dangerfield & Telford, 1991; Ambarish & Sridhar, 2016)、食土性(Bano et al., 1976; Bano, 1992)等多种类型, 在生态系统中扮演着消费者、分解者、生态系统工程师及碳氮循环调控者等多重功能角色(Joly et al., 2015; Li et al., 2023; 李媛媛等, 2025), 因而可能对土壤温室气体排放产生至关重要的影响。马陆不仅通过自身的呼吸、取食、分泌和排泄等活动直接地产生和释放温室气体(Maraun & Scheu, 1996; Šustr et al., 2020), 还能通过与微生物的相互作用影响凋落物分解、碳氮循环过程、植物生长及土壤理化环境, 从而间接调控温室气体排放(Kobayashi et al., 2014; Wang et al., 2019; Šustr et al., 2020) (图1)。特别是在气候、资源质量和土地覆盖等全球变化加剧的背景下, 马陆的生活史、同化和消化效率、排泄物性质、群落结构及其与微生物和其他土壤动物的互作关系正发生深刻变化(David, 2009; David & Coulis, 2015), 进而可能直接或间接影响土壤碳氮过程及相关温室气体排放动态。
作为生态系统中凋落物的消费者与分解者, 马陆能够通过取食分解凋落物的肠道过程, 直接驱动CO2、CH4及N2O等温室气体的产生与释放(图1)。研究表明, 马陆每天消耗的凋落物可占其自身生物量的10%-20%。据Cárcamo等(2000)、Golovatch和Kime (2009)、Lam等(2024)的研究, 温带森林每年凋落物输入量的10%-36%被马陆所消耗, 其消耗量和分解过程中温室气体的排放受凋落物理化性质的影响。Šustr等(2020)的研究表明, 马陆通过肠道内多样化的微生物群落(如产甲烷菌、反硝化细菌等)直接产生并释放温室气体, 且高氮含量和低C/N比的凋落物有利于温室气体排放。马陆取食分解凋落物对CO2、CH4及N2O直接排放的影响, 主要源于其肠道是一个微型高效的“生物反应器”。马陆肠道是一条贯穿身体腹面中央的管道, 包括前肠、中肠和后肠3段(Hopkin & Read, 1992) (图1)。前肠包括口、口腔、食道和嗉囊, 主要负责取食和暂时储存食物(Rost-Roszkowska et al., 2018); 中肠是最关键的消化段, 肠壁上皮由消化细胞、再生细胞等构成, 是消化酶合成与分泌、化学消化和营养吸收的核心场所(Rost-Roszkowska et al., 2025); 后肠与前肠一样源于外胚层, 常膨大为直肠, 主要负责形成粪球、重吸收水分和离子以及排泄含氮废物(Fontanetti et al., 2015)。因此, 马陆对凋落物的分解主要发生在中肠, 而微生物发酵主要发生在后肠, 能够直接通过呼吸和排泄产生CO2、CH4及N2O气体(图1)。
马陆对凋落物的取食、破碎和分解作用, 可通过介导微生物及土壤动物活动间接影响温室气体排放(图1) (Cárcamo et al., 2000; Li et al., 2023; 李媛媛等, 2025)。Kheirallah (1990)、Cárcamo等(2000)和David (2014)研究表明, 马陆不仅能通过体表传播微生物影响凋落物分解, 还能通过凋落物破碎增加其表面积。这种物理结构的改变为微生物定殖创造了有利条件, 大幅刺激了土壤真菌、细菌和放线菌等微生物繁殖, 以及跳虫和螨虫等其他土壤动物的定居(Cárcamo et al., 2000; 张雪萍等, 2001; Efimenko et al., 2022; Chang et al., 2024), 进而间接促进凋落物分解及温室气体排放(Kheirallah, 1990; Šustr et al., 2020; Li et al., 2023)。马陆取食凋落物后通过肠道过程将其转化为粪球, 增大了凋落物与微生物和其他动物的接触面积, 进而促进土壤异养菌、放线菌和解磷菌等微生物的分解作用及碳氮养分释放(Ambarish & Sridhar, 2016; Wang et al., 2019; Brown et al., 2021), 从而间接地调控温室气体排放(Cárcamo et al., 2000; Suzuki et al., 2013; 李媛媛等, 2025)。Suzuki等(2013)开展的以带马陆目物种Harpaphe haydeniana取食大叶槭(Acer macrophyllum)与花旗松(Pseudotsuga menziesii)的微宇宙实验结果表明, 马陆通过取食和排泄改变凋落物性质, 进而影响微生物活动, 最终影响CO2排放。David (2014)指出, 马陆形成大而紧实的粪球, 可能减少微生物定殖的表面积, 但微生物呼吸仅在粪球形成初期被短暂刺激。从长期来看, 粪球的质量损失速率及温室气体排放速率并不一定高于未分解的凋落物。一些研究认为, 粪球中的有机物更难分解, 有助于碳的固存和稳定, 从而抑制了CO2、CH4等气体的排放; 而另一些观点则认为粪球的分解速率更快, 加速了碳循环及相关气体的排放。这种分歧可能源于凋落物类型的差异。Joly等(2015)对26种树木凋落物的筛选试验表明, 粪球与凋落物的微生物呼吸速率差异取决于初始凋落物质量。在初始微生物活性较低的凋落物中, 粪球对微生物的刺激作用更为明显。这一发现揭示了凋落物质量对马陆间接作用效应的调控作用。另外, 大量未被马陆消化的物质以粪球形式释放出来, 通过形成厌氧微生境促进产甲烷菌和反硝化细菌等微生物的活动, 从而可能间接地刺激CH4和N2O的排放(Šustr et al., 2014, 2020)。
马陆能够通过刺激土壤碳矿化过程, 进而促进或抑制温室气体排放(图1), 其主要过程或机制包括: (1)马陆将凋落物转化为粪球, 增加了凋落物的比表面积; 同时粪球富含丰富的养分, 能够激发微生物活性, 尤其是革兰氏阴性菌、芽孢杆菌属(Bacillus)、假单胞菌属(Pseudomonas)等r型微生物利用易分解有机碳, 可能加速土壤碳矿化过程及其CO2排放(Scheu & Wolters, 1991; Ramanathan & Alagesan, 2012)。(2)马陆把凋落物转化为粪球后吸收了可溶性部分, 留下的难分解的木质素等物质使粪球更难分解, 减弱了土壤碳的矿化(Rawlins et al., 2006), 可能抑制土壤CO2的排放而促进CH4产生。Maraun 和Schcu (1996)研究发现, 马陆对CO2排放的影响取决于凋落物的分解阶段, 分解早期的凋落物可溶性有效碳丰富, 微生物可利用底物充足, 可促进CO2排放; 而分解后期的凋落物可溶性有效碳已耗竭, 微生物可利用底物缺乏, 最终抑制CO2排放。(3)马陆等大型动物在土壤中的筑巢、穿行、运动等生物扰动及其排泄物和分泌物能够刺激土壤团聚体的形成, 改善土壤通气性及影响微生物繁殖, 直接促进碳矿化过程及温室气体的扩散和排放(韩兴国和王智平, 2003; Seeber et al., 2006; Cao et al., 2022)。特别是马陆通过将表层凋落物转化为粪球并混入土壤, 促进了有机碳从地表向矿质土层的转移。这一过程既可能通过物理保护作用(如团聚体形成)延缓碳矿化, 从而减少CO2和CH4排放, 也可能因粪球中活性有机质含量高而短暂促进微生物呼吸(Li et al., 2023; 李媛媛等, 2025)。(4)马陆的选择性取食(如偏好某些真菌)以及肠道或粪便中富集特定的功能酶(如纤维素酶、酚氧化酶及过氧化物酶等)、微生物类群和功能基因, 往往促进某些生长快速、呼吸和矿化强烈的微生物类群的繁殖, 从而影响碳矿化过程中的CO2和CH4排放(da Silva et al., 2017; Wang et al., 2019; Koubová et al., 2023; Li et al., 2023)。
马陆通过取食凋落物和土壤中的有机质, 经由消化、分泌及排泄等生命活动影响肠道厌氧微生物、土壤功能微生物及理化状况, 进而直接或间接地驱动土壤氮矿化及相关温室气体的排放(图1) (Cárcamo et al., 2000; Li et al., 2023)。
马陆一方面能通过自身代谢和肠道微生物呼吸作用直接产生温室气体, 另一方面可通过刺激土壤微生物和动物活动、改变微生物群落多样性及土壤理化环境, 进而间接调控土壤呼吸过程中CO2的排放(图1) (Cárcamo et al., 2000; Li et al., 2023; 李媛媛等, 2025)。
本文的其它图/表
|
备案号:京ICP备16067583号-7
Copyright © 2026 版权所有 《生物多样性》编辑部
地址: 北京香山南辛村20号, 邮编:100093
电话: 010-62836137, 62836665 E-mail: biodiversity@ibcas.ac.cn